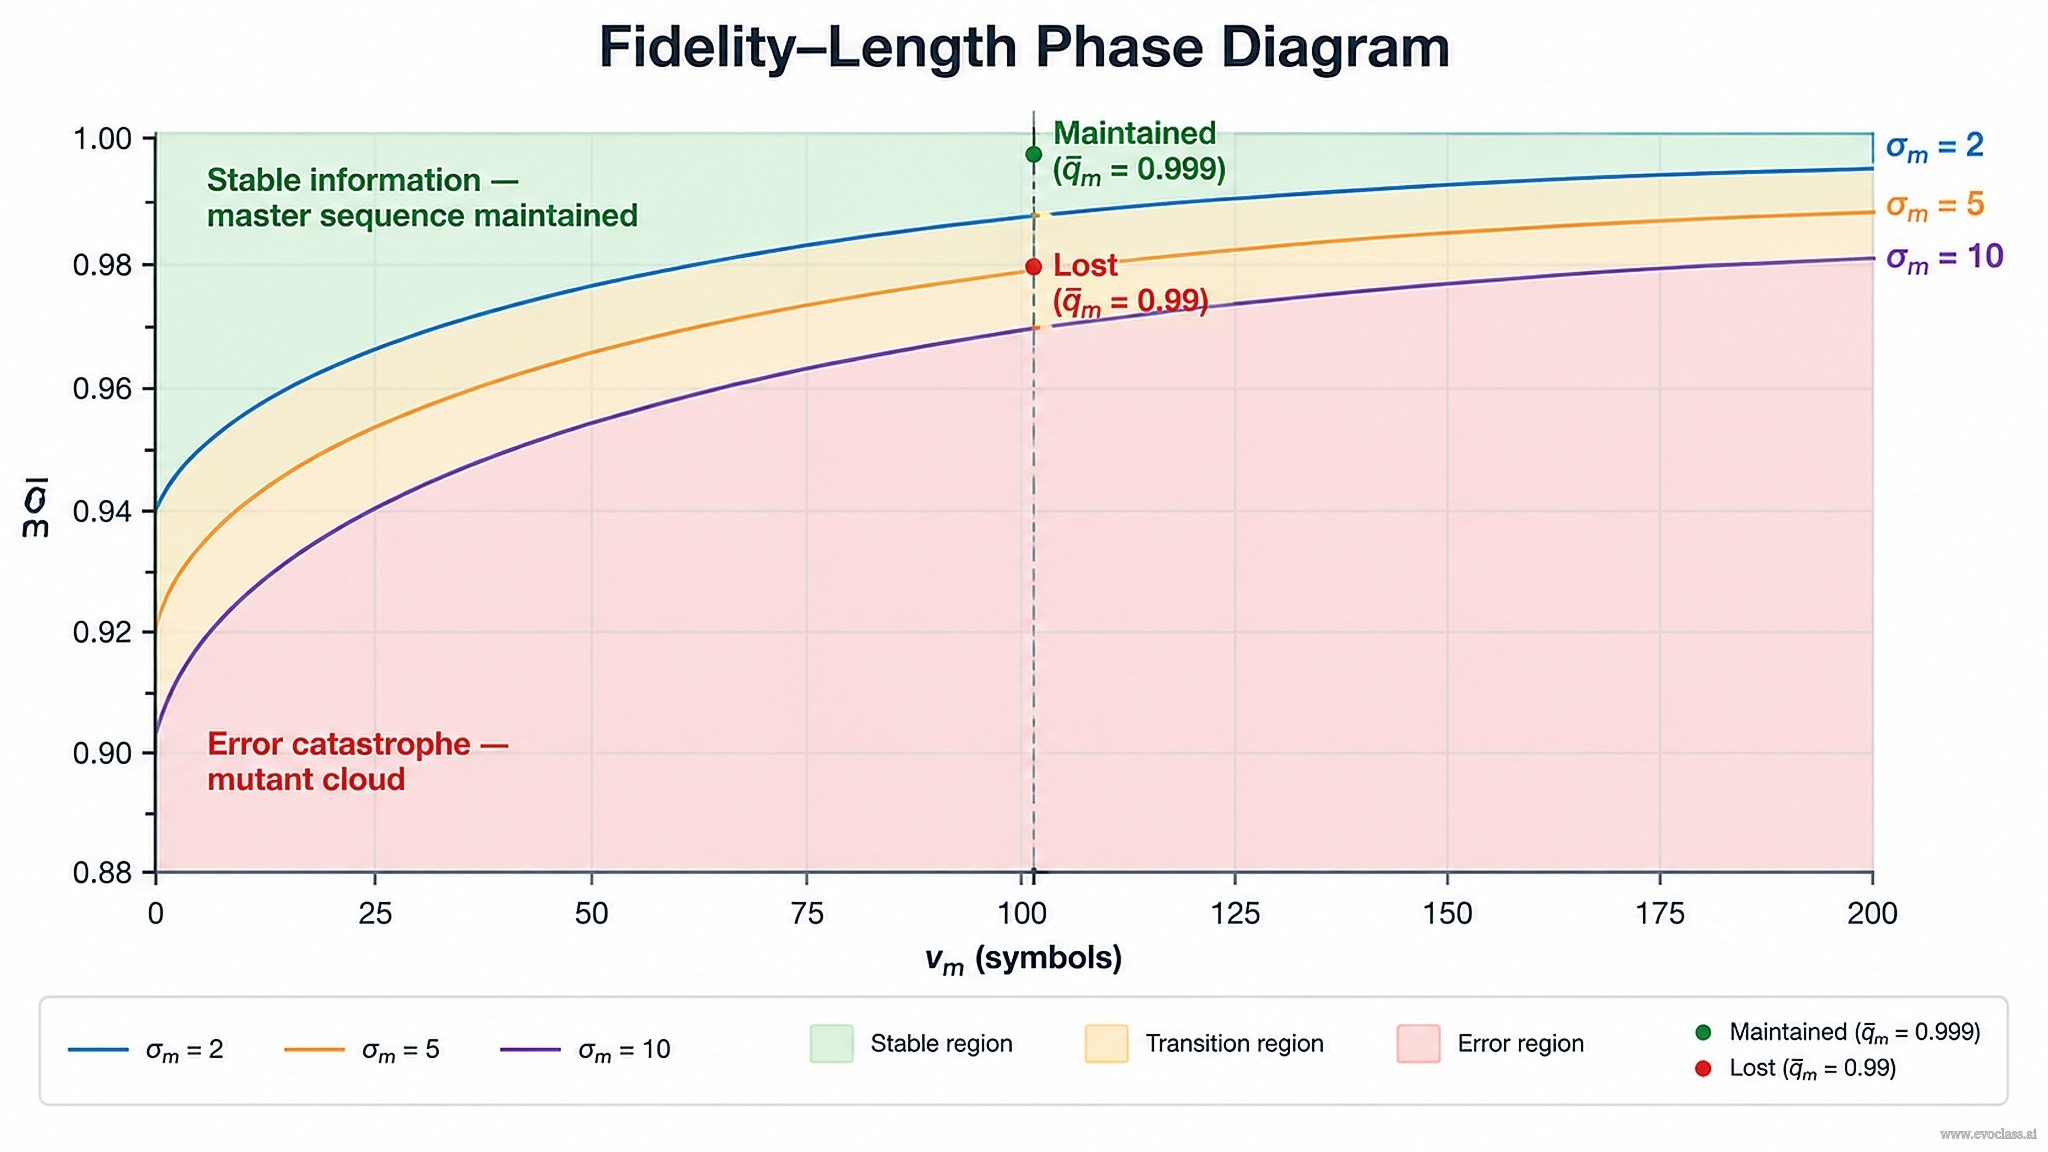
สารสนเทศเชิงโมเลกุลไม่ได้ถูกรักษาไว้โดยอัตโนมัติ การจำลองแบบ การกลายพันธุ์ การเชื่อมโยงเชิงตัวเร่งปฏิกิริยา และความได้เปรียบในการคัดเลือก ล้วนเป็น คุณสมบัติที่ถูกกำหนดขึ้นโดยเฉพาะ ของระบบเคมีเฉพาะ ไม่ใช่คุณลักษณะสากลของสสารใด ๆ เมื่อระบบที่จำลองแบบได้ถือกำเนิดขึ้น ความสามารถในการรักษาลำดับที่มีความหมายจะขึ้นอยู่กับสมดุลเชิงปริมาณ กล่าวคือ ความผิดพลาดที่เกิดขึ้นระหว่างการคัดลอกจะต้องถูกยอมรับได้ด้วยความได้เปรียบในการคัดเลือกที่ลำดับที่มีความหมายมีเหนือกลุ่มกลายพันธุ์ของมัน
สำหรับลำดับแม่แบบที่มีความยาว vₘ ค่าความแม่นยำเฉลี่ยต่อสัญลักษณ์ q̄ₘ และความได้เปรียบในการคัดเลือก σₘ เหนือค่าเฉลี่ยของกลายพันธุ์ เงื่อนไขการรักษาเสถียรภาพคือ
q̄ₘvₘ · σₘ > 1
ในที่นี้ q̄ₘvₘ คือความน่าจะเป็นที่สำเนาทั้งชุดจะปราศจากข้อผิดพลาด และจะลดลงแบบเอ็กซ์โพเนนเชียลเมื่อ vₘ เพิ่มขึ้น ปัจจัย σₘ คือส่วนต่างการคัดเลือกที่ยอมรับสำเนาที่ผิดพลาดซึ่งยังคงถูกเก็บรักษาไว้ได้ ขีดจำกัดความผิดพลาดคือขอบเขต q̄ₘvₘ · σₘ = 1
การอ่านความสัมพันธ์ของขีดจำกัด
Rearranged, the boundary reads q̄ₘ > σₘ−1/vₘ ดังนั้นความแม่นยำ ความยาว และความได้เปรียบในการคัดเลือกจึงเป็นปัจจัยชี้ขาดร่วมกัน ไม่มีปัจจัยใดที่สามารถเลือกได้อย่างเป็นอิสระจากอีกสองปัจจัยที่เหลือ
- ความแม่นยำเฉลี่ย q̄ₘ — ความน่าจะเป็นเฉลี่ยในการคัดลอกสัญลักษณ์หนึ่งตัวได้อย่างถูกต้อง
- ความยาวลำดับ vₘ — จำนวนสัญลักษณ์ที่ต้องถูกคัดลอกอย่างถูกต้องทั้งหมด
- ความได้เปรียบในการคัดเลือก σₘ — ลำดับแม่แบบจำลองแบบได้เร็วเป็นกี่เท่าของสมาชิกโดยเฉลี่ยในกลุ่มกลายพันธุ์ของมัน
เหนือและต่ำกว่าขีดจำกัด
เหนือขีดจำกัดขึ้นไป การคัดเลือกจะรวมประชากรให้กระจุกตัวรอบลำดับที่มีความหมาย ยอดควอซีสปีชีส์ที่เสถียรจะถูกคงไว้ และปัจเจกส่วนใหญ่ยังคงสืบทอดมาจากลำดับแม่แบบ ต่ำกว่าขีดจำกัดลงมา ลำดับแม่แบบไม่สามารถแยกแยะออกจากกลายพันธุ์ของมันได้ ประชากรจะกระจายตัวออกเป็นกลุ่มกลายพันธุ์ที่กว้าง และสารสนเทศที่ถูกเข้ารหัสไว้จะสูญหาย — นี่คือหายนะจากความผิดพลาด
การเปลี่ยนสถานะนี้คล้ายกับการเปลี่ยนเฟส โดยเป็นการแยกสภาวะที่มีระเบียบและบรรจุสารสนเทศออกจากกลุ่มกลายพันธุ์ที่ไร้ระเบียบ มากกว่าที่จะอธิบายถึงการเสื่อมถอยอย่างค่อยเป็นค่อยไป
เหตุใดความยาวและความได้เปรียบจึงต้องแลกกัน
เนื่องจาก q̄ₘvₘ เป็นฟังก์ชันเอ็กซ์โพเนนเชียลของ vₘ ลำดับที่ยาวกว่าจึงต้องการความแม่นยำที่สูงขึ้นแบบเอ็กซ์โพเนนเชียล ในทางกลับกัน σₘ ที่สูงกว่าจะช่วยให้ vₘ ยาวขึ้นหรือ q̄ₘ ต่ำลงได้ การแลกเปลี่ยนนี้จำกัดความยาวของตัวจำลองแบบในยุคแรก ด้วยความแม่นยำก่อนชีวภาพที่เป็นจริง มีเพียงลำดับสั้น ๆ เท่านั้นที่สามารถรักษาไว้ได้ ซึ่งนำไปสู่แรงจูงใจสำหรับการจัดระเบียบในระดับที่สูงขึ้น เช่น ไฮเปอร์ไซเคิล ซึ่งตัวจำลองแบบสั้นหลายตัวเชื่อมโยงกันเป็นเครือข่ายที่ถูกคัดเลือกร่วมกัน
ตัวอย่างการคำนวณ
สมมติ vₘ = 100 และ σₘ = 2 เมื่อ q̄ₘ = 0.99 จะได้ q̄ₘvₘ ≈ 0.366 และ σₘ · q̄ₘvₘ ≈
สมมติฐานและข้อจำกัด
ขีดจำกัดแบบดั้งเดิมตั้งอยู่บนสมมติฐานของประชากรขนาดใหญ่ การจัดระเบียบคงที่ และภูมิทัศน์ความเหมาะสมแบบยอดเดียว ประชากรจำกัด ความเป็นกลาง การกลายพันธุ์แบบชดเชย และภูมิทัศน์ความเหมาะสมที่ขรุขระ จะทำให้การเปลี่ยนสถานะพร่าเบลอ แต่ไม่ได้ขจัดข้อจำกัดที่เป็นพื้นฐานออกไป
แผนภาพเฟสความแม่นยำ–ความยาวเส้นโค้งขีดจำกัด q̄ₘ = σₘ^(−1/vₘ) สำหรับ σₘ = 2, 5 และ 10 เมื่อพล็อตเทียบกับความยาวลำดับ vₘ เหนือเส้นโค้งขึ้นไป การคัดเลือกจะรวมประชากรให้กระจุกตัวอยู่บนลำดับแม่แบบ ต่ำกว่าเส้นโค้งลงมา ประชากรจะกระจายตัวออกเป็นกลุ่มกลายพันธุ์ที่กว้าง σₘ ที่สูงกว่าจะลดความแม่นยำที่ต้องการ ณ ความยาวที่กำหนด และจุดที่ทำเครื่องหมายไว้สองจุดที่ vₘ = 100 แสดงให้เห็นว่าการเปลี่ยน q̄ₘ จาก 0.99 (สูญหาย) เป็น 0.999 (รักษาไว้ได้) ข้ามขอบเขตไปได้อย่างไร